Uw winkelwagen is leeg
Gratis verzending bij bestellingen vanaf €60!
Gratis verzending bij bestellingen vanaf €60!

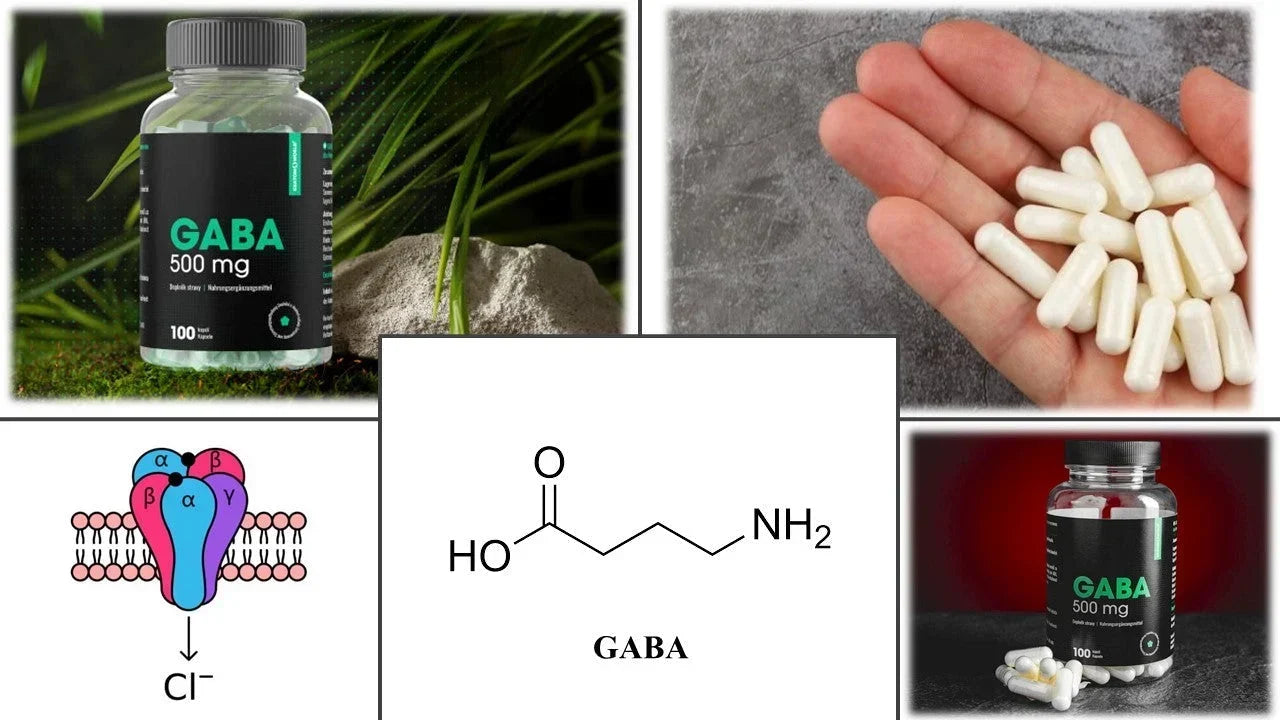
γ-Aminoboterzuur (GABA) is een klein, niet-proteïnogeen aminozuur dat chemisch wordt aangeduid als 4-aminobutaanzuur (afb. 1). In het lichaam van zoogdieren speelt het een essentiële rol als de belangrijkste remmende neurotransmitter in het centrale zenuwstelsel. Het onderdrukt overmatige neuronale activiteit en helpt het evenwicht te bewaren tussen exciterende, vooral glutamaterge, en remmende GABAerge signaaloverdracht (Foster and Kemp, 2006; Heli et al., 2022; Hepsomali et al., 2020). Dit evenwicht is cruciaal voor de stabiliteit van neuronale netwerken, de regulatie van angst, slaapdynamiek en stressreactiviteit, en voor het beïnvloeden van de gevoeligheid voor epileptische aanvallen en het ‘fijn afstemmen’ van neuronale communicatie binnen een breed scala aan hersencircuits (Kalueff and Nutt, 2007; Nuss, 2015; Perucca et al., 2023). Vanuit praktisch oogpunt heeft GABA een dubbele betekenis. Enerzijds is het een endogene molecule die het lichaam van nature aanmaakt en nauwkeurig reguleert. Anderzijds is het de afgelopen decennia een populair bestanddeel van functionele voedingsmiddelen en voedingssupplementen geworden, waaraan effecten worden toegeschreven zoals ontspanning, stressvermindering, ondersteuning van de slaap en soms ook een lichte beïnvloeding van de bloeddruk (Heli et al., 2022; Hepsomali et al., 2020; Inoue et al., 2003). Deze verwachtingen hebben een biologische grondslag, omdat het GABAerge systeem inderdaad centraal staat in de angstremmende en slaapbevorderende werking van talrijke geneesmiddelen. Bij suppletie met GABA zelf is het echter belangrijk onderscheid te maken tussen de fysiologische rol van endogeen GABA en de werkzaamheid van de oraal toegediende stof in gebruikelijke doseringen en vormen (Goldschen-Ohm, 2022; Hou et al., 2024). In een bredere context kan ook worden vermeld dat de markt voor met GABA verrijkte voedingsmiddelen zich vooral in Oost-Azië al geruime tijd ontwikkelt. Consumenten zien GABA vaak als een ‘neurovoedingskundig’ ingrediënt voor stress en slaap (Diana et al., 2014; Heli et al., 2022).
Vanuit chemisch oogpunt is GABA een eenvoudige molecule met de empirische formule C4H9NO2 en een molaire massa van ongeveer 103,12 g/mol. De polariteit en ladingstoestanden veranderen afhankelijk van de pH van de omgeving. Dit is belangrijk om het transport door biologische membranen te begrijpen en kan bijdragen aan de beperkte doorgang door bepaalde fysiologische barrières, vooral de bloed-hersenbarrière (Hepsomali et al., 2020; Hou et al., 2024; Zhang and Liu, 1998). GABA komt in verschillende voedingsmiddelen voor, waarbij het gehalte varieert en vaak wordt beïnvloed door verwerking, kieming en fermentatie. In populaire voedingsinformatie worden bronnen zoals thee, tomaten, soja, gekiemde rijst en diverse gefermenteerde producten vaak genoemd. Fermentatie met lactobacillen kan de GABA-concentratie in de voedingsmatrix verhogen (Diana et al., 2014; Hou et al., 2024; Icer et al., 2024; Iorizzo et al., 2024). Dit is ook methodologisch belangrijk, omdat sommige klinische studies werken met ‘natuurlijk’ GABA uit gefermenteerde bronnen, zoals gefermenteerde rijstkiemen, terwijl andere studies biosynthetisch GABA in capsules of tabletten gebruiken. In de praktijk komen we dus zowel de zuivere, geïsoleerde stof als complexe matrices tegen, waarin GABA samen met andere bestanddelen kan werken en waarin het moeilijker is om een effect uitsluitend aan GABA zelf toe te schrijven (Byun et al., 2018; Hepsomali et al., 2020). De endogene synthese van GABA in zenuwweefsel vindt voornamelijk plaats door decarboxylering van glutamaat door het enzym glutamaatdecarboxylase (GAD), dat pyridoxalfosfaat, de actieve vorm van vitamine B6, als cofactor gebruikt (Jiang et al., 2025; Marilovtseva et al., 2025). Dit biochemische detail is praktisch relevant om te begrijpen dat GABA geen ‘lichaamsvreemde’ stof is, maar deel uitmaakt van het neurotransmitterevenwicht dat het lichaam actief in stand houdt. Na de synthese wordt GABA naar synaptische blaasjes getransporteerd, in de synaptische spleet vrijgegeven, aan postsynaptische receptoren gebonden en vervolgens door transporters weer opgenomen en afgebroken via routes die samenhangen met het cellulaire en mitochondriale metabolisme (Jin et al., 2003; Roth and Draguhn, 2012).

Afbeelding 1. Gamma-aminoboterzuur (GABA).
GABA werkt voornamelijk via GABA-receptoren. GABA-A-receptoren zijn ionotrope, ligandgestuurde ionkanalen die doorgaans samenhangen met de stroom van chloride-ionen (Luo and Balle, 2022), terwijl GABA-B-receptoren metabotroop zijn, dat wil zeggen gekoppeld aan G-eiwitten, en de prikkelbaarheid van cellen indirect beïnvloeden (Gaiarsa and Porcher, 2013). Sommige classificaties vermelden ook GABA-C; in de moderne benadering wordt dit doorgaans besproken in de context van ionotrope receptoren, historisch vooral receptoren met ρ-subeenheden (Bormann, 2000). Activering van GABA-receptoren leidt tot een algemene afname van de neuronale prikkelbaarheid en een versterking van de remmende tonus. Dit is fysiologisch belangrijk voor de regulatie van angst en stress, de slaaparchitectuur en de stabiliteit van neuronale circuits (Bormann, 2000; Hepsomali et al., 2020; Luo and Balle, 2022). Vanuit het perspectief van voedingssupplementen is de belangrijkste vraag echter of en hoe oraal ingenomen GABA het centrale zenuwstelsel kan beïnvloeden. De heersende opvatting is al geruime tijd dat GABA slechts in beperkte mate de bloed-hersenbarrière (BHB) passeert. De literatuur is historisch gezien tegenstrijdig, en bij mensen ontbreekt robuust direct bewijs, zoals een consistente stijging van GABA in de hersenen na orale toediening, gemeten met methoden zoals magnetische-resonantiespectroscopie (MR-spectroscopie). Een systematische review over stress en slaap benadrukt expliciet dat er bij mensen geen overtuigend direct bewijs beschikbaar is voor de doorlaatbaarheid van de BHB voor GABA (Boonstra et al., 2015; Hepsomali et al., 2020). Dit heeft belangrijke gevolgen voor de interpretatie van de werkzaamheid van suppletie. Hoewel de betrokkenheid van het GABAerge systeem biologisch goed te onderbouwen is, hoeft het effect van oraal GABA niet voornamelijk tot stand te komen door rechtstreeks ‘GABA aan de hersenen te leveren’. Daarom wordt de laatste jaren vaak gesproken over indirecte effecten via perifere weefsels en de darm-hersenas. De hypothese is dat oraal GABA buiten het centrale zenuwstelsel (CZS) kan werken, bijvoorbeeld in het enterische zenuwstelsel, en stress- en slaapgerelateerde verschijnselen kan beïnvloeden via autonome regulatie en vagale zenuwbanen (Boonstra et al., 2015; Jiang et al., 2025; Liwinski et al., 2023). Dit kader is biologisch aannemelijk en sluit ook aan bij de bredere interpretatie van bepaalde ‘psychobiotische’ effecten. De klinische onderbouwing van de volledige causale keten van dosis, perifeer signaal, centrale verandering en klinisch relevant effect is echter nog beperkt en wordt vaak bemoeilijkt door methodologische verschillen tussen studies (Boonstra et al., 2015; Hepsomali et al., 2020; Liwinski et al., 2023). Farmacokinetische gegevens bieden daarbij belangrijke aanknopingspunten voor realistische verwachtingen van het effect. In een studie naar de farmacokinetiek en farmacodynamiek werd GABA na orale toediening snel opgenomen. De maximale plasmaconcentratie werd binnen ongeveer 0,5 tot 1,5 uur bereikt en de eliminatiehalfwaardetijd bedroeg enkele uren, ongeveer vijf. Bij herhaalde hoge dosering van driemaal daags 2 g gedurende zeven dagen werd geen significante ophoping waargenomen (Li et al., 2015). Dit ondersteunt eerder de hypothese van een effect kort na inname dan het idee van een stabiele centrale sedatie die ‘de hele dag’ aanhoudt (Hepsomali et al., 2020). In dezelfde studie werden ook systemische en endocriene veranderingen beschreven, zoals een stijging van circulerend insuline en bij sommige doseringsschema’s ook van glucagon, zonder duidelijke veranderingen in de bloedglucose bij gezonde personen. Dit wijst op een complexe regulatoire respons en niet op een eenvoudig metabolisch effect in één richting (Li et al., 2015).
Op het gebied van stress en subjectieve ontspanning steunen studies vaak op indirecte indicatoren, zoals hartslagvariabiliteit, veranderingen in elektro-encefalografische registraties (EEG) of psychometrische schalen die op korte termijn worden gebruikt. Overzichtsliteratuur vermeldt dat de doseringen voor het beoordelen van stressmarkers uiteenlopen van enkele milligrammen in dranken of voedingsmiddelen tot ongeveer 100 mg bij biosynthetisch GABA. De methodologische diversiteit maakt een robuuste meta-analytische samenvatting voorlopig echter niet mogelijk (Abdou et al., 2006; Hepsomali et al., 2020). Binnen dit kader vallen ook studies die veel media-aandacht kunnen trekken maar methodologisch beperkt zijn, zoals een kleine gerandomiseerde cross-overstudie bij e-sporters met een dosis van 200 mg. Daarbij werden veranderingen gevonden in enkele subjectieve domeinen en geselecteerde prestatiematen, maar het kleine aantal deelnemers en financiering door de industrie verzwakken de conclusies (Hara et al., 2025). Wat slaap betreft, heeft het meest consistente klinische signaal betrekking op de slaaplatentie, oftewel de tijd die nodig is om in slaap te vallen. Een systematische review noemt studies bij mensen met een verminderde slaapkwaliteit, waarin 100 mg biosynthetisch GABA gedurende één week leidde tot een kortere slaaplatentie en meer non-remslaap, maar zonder overtuigend effect op een breder scala aan parameters, zoals nachtelijk ontwaken of remslaap (Hepsomali et al., 2020; Yamatsu et al., 2016). Het klinisch best onderbouwde bewijs voor slapeloosheid komt uit gerandomiseerde, dubbelblinde, placebogecontroleerde studies met polysomnografie, waarin natuurlijk GABA uit gefermenteerde rijstkiemen werd gebruikt. Een studie met een dosis van 300 mg per dag gedurende vier weken beschreef een verkorting van de slaaplatentie en een verbetering van enkele subjectieve scores. Tegelijkertijd moeten de methodologische beperkingen worden genoemd, vooral de randomisatieverhouding die resulteerde in een kleine placebogroep en verschillen in de uitgangswaarden (Byun et al., 2018). Een vervolgstudie met een lage dosis van 75 mg per dag gedurende vier weken beschreef eveneens een kortere slaaplatentie en enkele veranderingen in de slaaparchitectuur, zoals een toename van stadium N3, de diepe slaap, en een afname van de arousalindex. De interpretatie van deze resultaten hangt echter af van het gebruikte statistische model en van de vraag of het effect aantoonbaar is ten opzichte van placebo of uitsluitend een verandering binnen de interventiegroep betreft (Yoon et al., 2022). In de klinische literatuur komen ook bloeddruk en autonome regulatie aan bod. Bij mensen met een licht verhoogde bloeddruk beschreven sommige studies met GABA-verrijkte gefermenteerde producten een daling gedurende een interventie van meerdere weken, inclusief interpretaties die wijzen op het aanhouden van het effect binnen een schema van ongeveer twaalf weken (Diana et al., 2014; Inoue et al., 2003). Veiligheidsoverzichten wijzen er tegelijkertijd op dat GABA gepaard kan gaan met een tijdelijke en doorgaans lichte bloeddrukdaling. Hoewel deze relatief klein is, kan ze klinisch relevant zijn, vooral bij mensen die bloeddrukverlagende geneesmiddelen gebruiken, bij wie de combinatie theoretisch het risico op hypotensie kan verhogen (Oketch-Rabah et al., 2021). In de marketing van supplementen wordt GABA soms in verband gebracht met groeihormoon. Hierbij is het belangrijk uit te gaan van klinische gegevens en farmacologische doseringen te onderscheiden van gebruikelijke suppletie. Oudere endocrinologische literatuur laat zien dat een eenmalige orale dosis van 5 g GABA de groeihormoonspiegel in het plasma kan verhogen, terwijl herhaalde zeer hoge doseringen van ongeveer 18 g per dag gedurende enkele dagen hormonale reacties bij provocatietests kunnen veranderen, waaronder verschillende reacties van groeihormoon en prolactine (Cavagnini et al., 1980). Deze resultaten zijn belangrijk om het biologische potentieel van GABA te begrijpen, maar zijn niet rechtstreeks toepasbaar op gebruikelijke voedingssupplementen met doseringen van tientallen tot honderden milligrammen. Nieuwere studies gericht op fitness omvatten kleinere interventies, zoals een combinatie van wei-eiwit en dagelijks 100 mg GABA tijdens weerstandstraining, waarbij veranderingen in bepaalde lichaamssamenstellings- en hormonale parameters werden beschreven. De interpretatie van deze bevindingen wordt echter beperkt door kleine onderzoeksgroepen, de gecombineerde interventie en de niet geheel duidelijke klinische betekenis van veranderingen in de groeihormoonspiegel in rust (Sakashita et al., 2019). Vanuit veiligheidsoogpunt is het beeld tot nu toe relatief gunstig. Een uitgebreide veiligheidsbeoordeling in het kader van de United States Pharmacopeia vermeldt dat in klinische studies geen ernstige bijwerkingen werden waargenomen, ook niet bij sommige kortdurende schema’s tot 18 g per dag gedurende vier dagen, en dat het veiligheidsprofiel bij langere studies met lagere doseringen gunstig blijft (Byun et al., 2018; Oketch-Rabah et al., 2021). Tegelijkertijd wordt herhaaldelijk benadrukt dat een bloeddrukdaling klinisch relevant kan zijn bij gelijktijdige behandeling met bloeddrukverlagende geneesmiddelen. Een farmacokinetische en farmacodynamische studie met een hoge eenmalige dosis van 2 g en driemaal daags 2 g gedurende zeven dagen gaf een gedetailleerder beeld van de verdraagbaarheid. De meest gemelde klachten waren een branderig gevoel in de keel, een branderig gevoel van de huid, hoofdpijn en duizeligheid. Ongewenste voorvallen kwamen vaker voor bij herhaalde hoge doseringen dan na een eenmalige dosis (Li et al., 2015). In slaapstudies met doseringen van 75 tot 300 mg per dag was de verdraagbaarheid over het algemeen goed. Bij 300 mg traden voornamelijk lichte tot matige klachten op, zoals buikklachten, hoofdpijn of slaperigheid, terwijl bij 75 mg geen bijwerkingen werden gemeld (Byun et al., 2018; Yoon et al., 2022).
In de praktijk is het zinvol GABA te beschouwen als een van meerdere mogelijkheden voor stressbeheersing en ondersteuning van de slaap. Bij chronische slapeloosheid hebben gedragsmatige en psychologische interventies, vooral cognitieve gedragstherapie voor insomnie, de meest overtuigende wetenschappelijke onderbouwing (Edinger et al., 2021; Riemann et al., 2023). Van de andere voedingssupplementen is melatonine relatief goed onderbouwd. Meta-analyses van gerandomiseerde studies beschrijven doorgaans een statistisch significante, zij het eerder bescheiden, verkorting van de slaaplatentie en verbetering van enkele geselecteerde slaapparameters (Ferracioli-Oda et al., 2013). Voor sommige bevolkingsgroepen, bijvoorbeeld ouderen met een verminderde slaapkwaliteit, zijn ook placebogecontroleerde gegevens over magnesium beschikbaar. Daarbij werden veranderingen gevonden in subjectief beoordeelde insomnieparameters en enkele stressgerelateerde laboratoriummarkers (Mah and Pitre, 2021). Voor L-theanine, een niet-proteïnogeen aminozuur dat van nature in thee voorkomt, zijn reviews en meta-analyses over slaap beschikbaar. De conclusies daarvan zijn echter doorgaans voorzichtig en hangen sterk af van de methodologische diversiteit van de studies, de gebruikte doseringen en de keuze van uitkomstmaten (Cotter et al., 2026; Esquivel and Ghosn, 2024).
Voor Kratom World geschreven door:
Ing. Matěj Malík, Ph.D.
Wetenschappelijk onderzoeker, postdoctoraal onderzoeker
Faculteit Agrobiologie, Voedsel en Natuurlijke Hulpbronnen, Tsjechische Universiteit voor Levenswetenschappen in Praag
Afdeling Agro-omgevingschemie en Plantenvoeding

Literatuurverwijzingen